Теломеразная теория старения клеток
В 1971 году русский ученый А.М.Оловников, обобщив свои наблюдения и эксперименты, пришел к выводу, что при репликации хромосом их концевые участки (теломеры) с каждым делением клетки укорачиваются и при достижении определенного предела репликация хромосом в соматических клетках прекращается, клетки перестают делиться и начинается процесс их старения, заканчивающийся гибелью клетки.
В 1985 году Грейдер и Блэкборн обнаружили и описали клеточный фермент – теломеразу. Механизм действия теломеразы – это повторяющееся кодирование с помощью РНК-матрицы, входящей в состав теломеразы, новых нуклеотидных последовательностей теломеры и, таким образом, восстановление ее исходной длины.
5.1. Теломера
Теломера – это участок хромосомы, локализованный на ее конце. Линейные хромосомы имеют по две теломеры. Теломера содержит специальные последовательности ДНК (нуклеотидные последовательности), обеспечивающие точную репликацию хромосом. Для теломерных участков хромосом характерна значительная гетерогенность в разных клетках и тканях даже одного организма.
При каждом делении клетки длина теломеры укорачивается на определенное число нуклеотидных последовательностей. При достижении некоего предела укорочения теломеры репликация хромосом прекращается, и клетка перестает делиться.
5.2. Теломераза
Теломераза – фермент (белок), основная функция которого достраивать новые нуклеотидные последовательности в теломерных участках хромосом. Теломераза несет собственную РНК-матрицу, и поэтому относится к классу обратных транскриптаз.
В соматических клетках ген теломеразы на протяжении всей жизни клеток остается не активным. Он активен только в половых клетках, в стволовых клетках, а также в соматических клетках, подвергнувшихся малегнизации. Именно поэтому эти клетки носят название «иммортализированные», то есть – бессмертные.
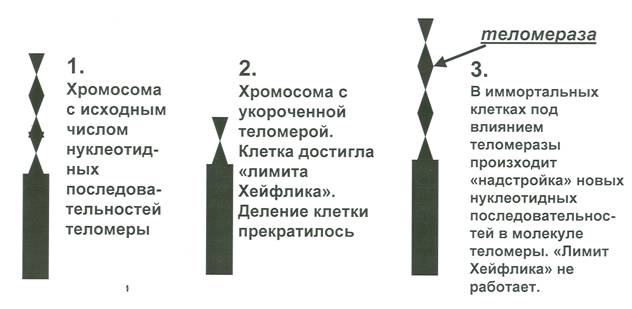
Рис.
1. Теломерная теория (теория маргинации) А.М.ОловниковаВ соматических клетках человека число нуклеотидных последовательностей
(н.п.) в теломере достигает 10 – 15 тысяч. При укорочении теломеры на 2 – 3 тыс.
н.п. репликация ДНК прекращается, и клетка перестает делиться. То есть, клетка
достигает «лимита Хейфлика»
5.3. Клеточный механизм реализации феномена старения и гибели клетки
Эксперименты с переживающими клетками в культуре ткани показали, что теломеры нормальной длины вызывают сайленсинг (от английского – silence «молчание»), то есть репрессию ряда прилежащих генов. При укорочении теломер эти гены активируются. В числе этих генов есть ген р53, ответственный за синтез одноименного белка – р53, основная функция которого блокирование митоза клеток на уровне «чек-пойнтов» митоза G1 и G2 (инактивация циклинов), а также индукция процесса апоптоза клетки. Данные свойства белка р53 позволяют его считать ответственных и за супрессию процесса малегнизации клетки, так как при нерепарированном изменении генома клетки им предупреждается как появление клона мутировавших клеток, так и инициируется апоптоз, то есть клетка с измененным геномом самоуничтожаеся. Схематически эти процессы представлены на Рис.2.
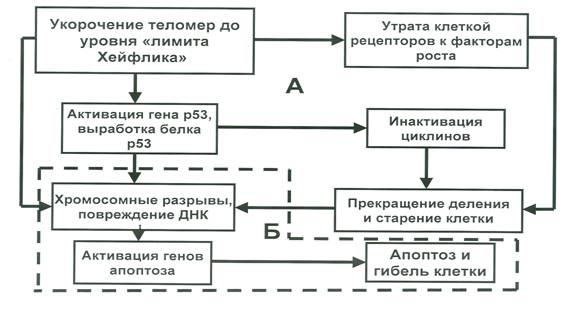
Рис. 2. Генетический механизм старения и гибели клетки (А – этап блокирования митоза;
Б – этап индукции апоптоза клетки)
5.4. Иммортализация опухолевых клеток
Патологи и клиницисты, изучавшие механизмы канцерогенеза, давно уже убедились в том, что клетки злокачественной опухоли, полученные в путем биопсии из организма экспериментальных животных или человека, способны жить и развиваться (то есть делиться) в культуре ткани практически вечно. Так, например, с 1951 года в лабораториях многих стран мира в культуре ткани живут опухолевые клетки, полученные в США в госпитале Университета Джона Гопкинса из биопсии рака шейки матки у женщины по имени Генриетта Лаке.
К сожалению, эта пациентка умерла от данного онкологического заболевания, но клетки ее опухоли под индексом HeLa продолжают служить людям, так как на этом материале изучаются механизмы канцерогенеза, апробируются различные противораковые препараты.В чем же причина бессмертия (иммортализации) опухолевых клеток? Каким образом им удается ускользнуть от действия «лимита Хейфлика»? Эксперименты показали, что в опухолевых клетках не происходит укорочение теломер. Кроме того, в них всегда присутствует теломераза. Последнее обстоятельство позволяет использовать теломеразу в качестве маркера опухолевого процесса.
Многочисленные эксперименты показали, что в клетках в процессе их малегнизации происходит активация гена теломеразы, которые в нормальных клетках, как уже указывалось выше, находятся в неактивном состоянии. Иначе говоря, в клетке, воспринявшей сигнал малегнизации, происходит с одной стороны блокирование генов-репрессоров опухолевого процесса (например, гена р53), а с другой, активация гена, ответственного за выработку теломеразы.
Схема механизмов иммортализации опухолевых клеток представлена на Рис.3.
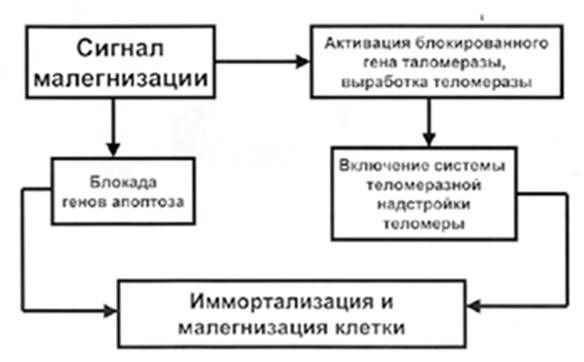
Рис. 3. Механизмы иммортализации опухолевых клеток
5.5. Экспериментальные факты, подтверждающие теломеразную теорию старения
клеток или ставящие ее под сомнение
В настоящее время теломеразная теория старения клеток считается экспериментально доказанной. Приведем некоторые доводы в пользу этого утверждения.
1. Фибробласты эмбриона человека, прошедшие в культуре ткани определенное число делений (например, 30) и замороженные на длительное время, после размораживание делятся не более 20 раз и, достигнув лимита Хейфлика, прекращают деление и погибают.
2. Соматические клетки, взятых у животных одного вида, но разного возраста, достигают лимита Хейфлика в разное время. Чем старше животное, тем меньшее количество делений совершают клетки.
3. Теломеры соматических клеток больных синдромами наследственной прогерии (синдром Хатчинсона-Гилфорда и синдром Вернера) при каждом делении укорачиваются на большее число н.п., чем клетки здорового организма
4.
Ген теломеразы, введенный в культуру соматических клеток, увеличивает лимит Хейфлика на 20 – 30 делений.5. Теломеры половых клеток при их делении не укорачиваются, но даже могут удлиняться. В половых клетках ген теломеразы активен и в них идет постоянное образование теломеразы.
6. Ген теломеразы активен и в опухолевых клетках. Теломераза является маркером опухолевого процесса.
7. Введение в культуру опухолевых клеток веществ, блокирующих или разрушающих теломеразу, приводит к остановке безудержного размножения этих клеток.
С другой стороны, есть экспериментальные данные, которые в определенной степени противоречат теломеразной теории старения клеток.
Укажем и эти факты.
1. В организме человека и животных имеются неделящиеся клетки, срок жизни которых сравним со сроком жизни макроорганизма (например, нейроны головного мозга). Их гибель не обусловлена достижением «лимита Хейфлика»
2. Заражение клеток вирусом SV40 приводит к тому, что они способны совершать по 20 – 40 делений сверх «лимита Хейфлика». Однако, в этих клетках отсутствует теломераза и в них продолжается укорочение теломер.
3. В некоторых случаях введение в клетку активного гена теломеразы (например, в клетки молочной железы) приводит к удлинению теломер, но не сопровождается увеличением лимита Хейфлика.
4.Помимо укорочения теломер в соматических клетках наблюдается и много других изменений ДНК. Например, увеличение числа разрывов в цепях ДНК, усиление прочности связывания белков с ДНК, снижение активности ферментов репарации ДНК и др. В результате этих процессов, не смотря на то, что теломеры еще не достигли критического укорочения, в клетке включаются механизмы блокады митотического цикла, она перестает делиться и погибает.